本文来自微信公众号: 返朴 ,作者:郭晓强
今年诺贝尔生理学或医学奖宣布颁给光遗传学的开创者之后,网络上流传着对涉及这项工作的几位华人科学家的故事,但这些故事不少过于简化甚至失真。
2026年诺贝尔生理学或医学奖授予卡尔・戴塞洛斯(Karl Deisseroth)、彼得・黑格曼(Peter Hegemann)与格奥尔格・内格尔(Georg Nagel),表彰他们“在光门控离子通道与光遗传学方面的发现”。消息公布后,网上很多科普文章、短视频都开始讲与开创光遗传学有关的几位华人科学家的故事,特别是关于钱永佑、潘卓华、张锋三人在这项成果里的角色。但是,出于对科学精神、科学史实和相关科学家的尊重,不得不指出,网传的不少说法是偏离史实的,越传越偏,反倒遗漏了他们在光遗传学发展过程中本该有的贡献。这几位华人学者,究竟在光遗传学的发展过程中扮演了什么角色?下面我们结合可信的文献和资料,逐一分析他们的贡献。
需强调的是,诺贝尔奖是科学界极具分量的荣誉,但奖项本身存在天然的选择性:诺奖最多仅可授予3人,评审需要在众多贡献者中取舍,奖项表彰的是特定的发现或发明,并不代表完整还原整个学科发展链条;未能获得诺奖,绝不等于相关工作没有价值,一些未获奖的成果同样深刻影响了科学发展乃至人类社会。
钱永健:光遗传学的早期构想者
在讲述网传故事的主角之一钱永佑教授之前,不得不先讲一下钱永佑的亲弟弟钱永健(Roger Yonchien Tsien)。大众对他最熟知的贡献是他对绿色荧光蛋白(GFP)的改造与优化,他凭借这项成果与另外两位科学家分享了2008年诺贝尔化学奖。除此之外,他在活细胞钙荧光探针开发领域同样成就卓著。但相对而言,学界与科普报道中较少提及他在光遗传学发展早期的前瞻性构想。
钱永健长期深耕生物显色与光敏分子研究,很早就萌生了用光调控神经元活动的思路。早在20世纪90年代末,他就在克里克理论构想基础上敏锐预判到黑格曼的藻类感光蛋白研究对神经科学的巨大潜力。1999年10月10日,钱永健在致黑格曼的电子邮件中表示[1]:他一直在寻找一种可行方案,将特定基因转入哺乳动物神经元,使细胞表达的蛋白能够实现光诱导去极化,进而触发动作电位。在研读黑格曼关于藻类光激活电导与视蛋白的研究后,他产生了浓厚兴趣,并注意到当时尚无文献报道将这类藻类视蛋白在爪蟾卵母细胞或人胚肾细胞中异源表达并完成电生理记录。因此他在信中问道:课题组是否尝试过相关表达实验,却未能检测到光激活电流?若实验失败,潜在原因究竟是细胞膜上视蛋白表达量不足、视黄醛辅因子供给欠缺,还是该视蛋白本身并非离子通道,需要其他通道蛋白协同发挥作用?
黑格曼曾将一份初步纯化的藻类视蛋白样品寄给钱永健,事后证实这份蛋白并不是目标感光蛋白。钱永健课题组的博士生勒内・梅杰(RenéMeijer)围绕该方向前后投入数年时间开展研究。据钱永健2011年的林道(Lindau)演讲回忆:梅杰先是花费两三年测试黑格曼提供的候选基因,一度观测到看似阳性的实验结果,后续才确认属于实验假象;团队又继续追踪研究一两年。之后梅杰从藻类基因组重新筛选得到两个更有潜力的候选基因,又耗费约一年时间开展相关研究,但最终未能取得突破。由于博士课题要求必须更换研究方向,视紫红质相关克隆便被搁置在冰箱,没有继续推进。钱永健本人将这段经历称作自己科研生涯的一次“大失败”。直至2002年,黑格曼才成功鉴定出真正的通道视紫红质;他与内格尔合作完成了钱永健在邮件中设想的异源表达与电生理检测实验。这一关键性突破,才为后续戴塞洛斯等研究者将通道视紫红质应用于神经元光控研究奠定了基础,直接推动光遗传学走向神经科学应用。
钱永佑:亦师亦友
关于戴塞洛斯和其博士导师钱永佑(Richard Tsien),短视频和自媒体里流传的说法是:戴塞洛斯是钱永佑的博士后,光遗传学那篇奠基性论文研究都是在钱永佑实验室完成的,钱永佑才是这项成果真正的幕后大佬。只是他为人淡泊、高风亮节,主动放弃署名,才把诺奖拱手让给了学生。
钱永佑教授是钙信号与神经传递领域的国际顶尖学者。他的研究阐明突触在健康与病变大脑中,如何参与神经元运算、调控神经网络功能,极大加深了人们对神经递质、药物以及分子调控钙通道的理解,对疼痛、自闭症等临床疾病研究有重要启发。
1992年,戴塞洛斯在哈佛大学获得生物化学学士学位,随后进入斯坦福大学MD/PhD连读项目,钱永佑是他博士阶段的导师,而不是博后导师。钱永佑初次见到戴塞洛斯,便被他身上那份坚定所打动。钱永佑后来回忆道:“那次见面很特别——他来参加面试,略带腼腆地跟我说,选择斯坦福大学,就是希望能和我一同开展研究。”当时实验室虽已接近满员,但戴塞洛斯的执着打动了钱永佑,最终得以进入实验室。1993年至1998年读博期间,戴塞洛斯主攻神经元钙信号,这正是钱永佑实验室的核心方向。在钱永佑的指导下,戴塞洛斯接受了扎实的神经科学训练,两人合作发表十余篇钙信号相关论文(代表作可见文献[2]和[3])。
关键的分野在戴塞洛斯博士毕业后。他先去罗伯特・马伦卡(Robert Malenka)实验室做博士后。斯坦福档案记载戴塞洛斯2004年启动建实验室的相关筹备,2005年1月才正式转为助理教授。根据当时还是钱永佑在读博士、与戴塞洛斯紧密合作的埃德·博伊登(Ed Boyden)回忆:2004年8月4日凌晨1点,他就是在钱永佑的实验室记录到通道视紫红质-2(ChR2)在蓝光刺激下诱发神经元动作电位;2005年奠基论文中大约一半ChR2相关实验均完成于钱永佑实验室,博伊登直至2005年3月底才搬迁至戴塞洛斯的新实验室开展后续实验。博伊登后来专门表达了对钱永佑的感谢和歉意,“光遗传学的第一篇论文中没有承认许多关键实验其实是在他的实验室里完成的”[4]。现有公开史料显示,钱永佑仅提供实验平台与设备,并未参与ChR2项目的课题设计、数据分析,也没有参与2005年奠基论文的撰写与署名工作。
钱永佑是戴塞洛斯学术道路上的引路人、博士导师,戴塞洛斯也曾多次在公开演讲和访谈中提及钱永佑对他的深远影响。当后来被问及对光遗传学诞生时的第一反应时,钱永佑表示,他为这项成果出自其实验室的两名研究生——戴塞洛斯(已毕业研究生)与博伊登(在读研究生)而深感自豪[1]。这和本届另外两位诺奖得主导师的角色不一样:黑格曼的导师厄斯特黑尔特(Dieter Oesterhelt),最早发现细菌视紫红质,并于2021年与戴塞洛斯、黑格曼共同获得拉斯克基础医学研究奖;内格尔的导师班贝格(Ernst Bamberg)长期深耕细菌视紫红质,在通道视紫红质研究中起到关键作用,曾与戴塞洛斯、黑格曼、内格尔等人共享欧洲大脑奖(The Brain Prize)。
潘卓华:赛道上的竞争者
本次诺奖所有相关讨论中,潘卓华的故事流传最广,常被简化演绎成一桩学术不公的悲剧叙事:潘卓华才是光遗传学的真正发明人,他最先想出用光控蛋白治疗失明,实验也做得更早;只是投稿接连被期刊不公拒稿,被戴塞洛斯“抢发论文”,硬生生丢掉了诺贝尔奖,属于被学术界埋没的天才。这种叙事把复杂的科研竞速、成果定位差异简化为单一的悲情故事,并不完全符合史实,但潘卓华的工作本身具备很高的学术价值,必须客观看待。
潘卓华教授长期研究视网膜色素变性,这是一种会造成失明的遗传性眼病。早在21世纪初,他就设想把光敏蛋白送入眼睛,用光调控神经元电活动以治疗失明,但一直找不到合适的光敏蛋白。2003年,黑格曼和内格尔报道ChR2的发现,给了他重要启发。
2004年,获得ChR2的DNA之后,潘卓华团队利用病毒转染技术,将ChR2表达在失明小鼠视网膜神经节细胞,再用光刺激,成功记录到神经元的电活动,首次在失明模型上证明光遗传学可以重建视网膜的光反应。但团队投稿并不顺利,2004年他们先投《自然》(Nature)被拒,编辑部建议转投《自然·神经科学》(Nature Neuroscience),再次被拒;2005年改投《神经科学杂志》(The Journal of Neuroscience),同样没能通过评审。几经辗转,论文直到2006年4月才在《神经元》(Neuron)杂志发表[5]。
遗憾之处在于,论文刊发时间晚于戴塞洛斯团队2005年8月的奠基论文[6]。在等待投稿、评审的这段时间,多篇思路相近的文章陆续发表,潘卓华的这项工作的定位也随之从人们想象中的“原创技术发明”,变成了光遗传学在视觉修复方向的应用验证。之后,潘卓华的研究重心也转向用光遗传学解决失明问题的转化研究。
2016年,STAT News、《新科学家》(New Scientist)等国外知名科学媒体专门报道过潘卓华在光遗传学早期的这项工作。在光遗传学发展史中,潘卓华的论文会被提到,但这项成果当时没有得到科学界的普遍认可,他没能拿到本次诺奖,也没有斩获光遗传学领域其他重磅奖项。
对于这个非常遗憾的结果,很多人只看到“投稿被拒”,却忽略更深层的原因。对比黑格曼、内格尔的基础发现示意图,以及2005—2006年戴塞洛斯、潘卓华等人的研究示意图就能明白,稿件被顶刊拒绝的核心原因是黑格曼与内格尔发现的是一种全新的光控离子通道,而戴塞洛斯、潘卓华等团队在2005—2006年所做的,是把这一通道转入神经元或视网膜细胞,让光来驱动神经活动。潘卓华的工作属于技术应用验证,不是一项全新的基础科学发现,所以最后只能发表在神经科学专业期刊。
事实上,戴塞洛斯等人2005年关于ChR2的奠基性论文[6]也曾被《科学》(Science)拒稿,转投《自然》后又被编辑部转给了《自然·神经科学》。《科学》的拒稿理由是:该研究仅证实ChR2可在神经元中有效发挥作用,缺乏其他创新性科学发现。这一评判标准同样可以用于审视潘卓华的这篇论文。如果诺奖评委着重考量基础科学发现,那么,即便潘卓华的论文与戴塞洛斯的同期发表,甚至更早见刊,也不能仅凭发表先后,就认定他理应获得诺奖。但这并不妨碍我们肯定潘卓华的贡献:他的成果在视觉神经科学领域仍具有重要价值。
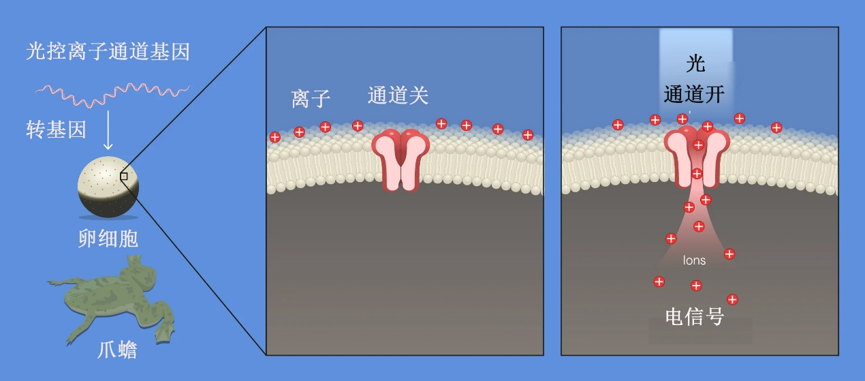
黑格曼和内格尔发现的示意图
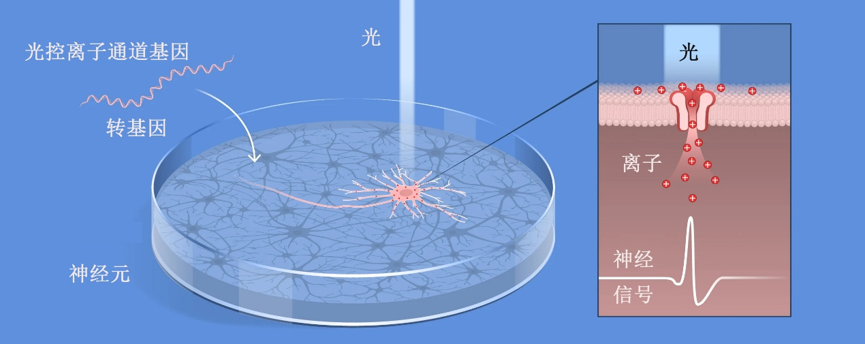
2005-2006年几项发现(包括戴塞洛斯和潘卓华教授等)的示意图
戴塞洛斯能够获奖,也不是只靠2005年这一篇论文,尽管这篇至关重要。后续他持续在活体动物身上实现光控神经环路,不断完善这项技术,并且借助这项工具揭示了大量神经系统的新规律,从而推动了光遗传学领域的快速发展。诺贝尔的遗嘱中强调生理学或医学奖颁给“做出最重要发现的人”,并不区分基础还是应用,但近几十年来,基础科学发现获生理学或医学奖更多,很多生命科学技术类成果最终拿到了化学奖。
总的来说,潘卓华这项工作有里程碑式的应用价值,但缺少戴塞洛斯后续一整套系统性突破,单凭这篇成果不足以冲击本次诺奖(当然,如果潘卓华教授能凭借这篇提前发表的论文获得学术认可与大量基金支持,且后续取得不亚于、甚至超越戴塞洛斯的研究成果,那就另当别论了)。即使戴塞洛斯凭借光遗传学方面的一系列贡献拿下多项国际顶级大奖,却也曾错失邵逸夫医学奖——2020年该奖由米森伯克(Gero Miesenböck)、黑格曼和内格尔共同获得。
比错失诺奖更让人惋惜的是,潘卓华同样没能拿到2024年沃尔夫医学奖。当年奖项授予博通德・罗斯卡(Botond Roska)与何塞-阿兰・萨埃尔(José-Alain Sahel),表彰他们利用光遗传学技术保护、恢复失明患者视觉,核心依据是2021年人体临床研究:研究团队用对琥珀色光敏感的光敏蛋白ChrimsonR、配合专用光护目镜,让一位几近失明的视网膜色素变性患者部分恢复了视觉。这是全球首例光遗传学治疗盲人取得临床视力恢复的实证。奖项着重从基础机制到临床试验的关键跨越,而潘卓华2006年的小鼠实验成果[5],再次和这项大奖擦肩而过。
张锋:关键助力者
在光遗传学发展历程中,张锋的确是重要的技术贡献者之一。但网上不少自媒体的说法是:张锋是光遗传学的核心发明人,当年这项技术主要是张锋做出来的;只是戴塞洛斯作为导师抢走了成果,张锋可惜没有拿到诺奖。甚至还谣传,光遗传学和后来CRISPR都是张锋独立原创的。
2004年,张锋从哈佛大学本科毕业进入斯坦福大学,正好赶上戴塞洛斯新建实验室,成为戴塞洛斯招收的第一位博士生,就此加入光遗传学的开拓工作。那时候实验室刚起步、人手紧缺,已经有扎实实验功底的张锋加入,大大加快项目进度。他利用此前积累的分子生物学实验经验,将ChR2装入慢病毒载体并制备病毒,提高了ChR2在神经元中的表达稳定性,为后续实验提供了重要技术支持;并因此成为2005年标志性论文的第二作者[6],在此之前,戴塞洛斯已完成ChR2的神经元基因转染,博伊登完成电生理活性检测,最终分别成为那篇论文的通讯作者和第一作者。2006年,张锋与王立平作为共同第一作者发表技术展望(Perspective)文章,探讨了ChR2作为标准化工具的应用问题[7]。
这些只是起点,张锋等人在后续研究持续发力,发表多篇重要论文。2007年,他再次与王立平作为共一在《自然》发表研究,将兴奋性的ChR2与抑制性的NpHR结合:在哺乳动物脑组织中实现双向光调控并结合钙成像;在线虫中则通过靶向肌肉和胆碱能运动神经元,实现运动的蓝光/黄光双向控制[8]。2008年,张锋等从团藻(Volvox carteri)的基因组中鉴定并表征了VChR1,这种蛋白相比ChR2具有明显的红移[9]。2011年,他又与黑格曼、戴塞洛斯等合著文章,系统介绍了微生物视蛋白及其作为光遗传学工具的潜力[10]。
不过,整个研究的课题设计、总体方向都是戴塞洛斯主导,按照学术惯例,成果归属以课题负责人为主。所以张锋并没有单独凭借光遗传学的贡献拿下国际顶级科学大奖(青年人才奖项除外)。
张锋后来转向CRISPR-Cas9基因编辑研究,并不是临时起意。最初的出发点之一,就是想继续拓展、优化光遗传学相关工具;而他在基因编辑领域做出的贡献,影响力已经超过当年在光遗传学里的工作。
光遗传学的发展本身,也能直观看到学术传承:戴塞洛斯是钱永佑的博士生,张锋又是戴塞洛斯的博士生。科学,就是靠着一代代科研人的接力慢慢往前走。
总而言之,诺贝尔奖是科学界分量极重的荣誉,但受评审规则、成果发表时序、贡献界定标准等多重因素影响,不是所有做出贡献的研究者,都有机会站上领奖台。本文梳理这些史实,是希望大家看懂这项重大发现背后,除了站在聚光灯下的人,还有很多默默耕耘也做出重要贡献的科研人。真正的尊重科学和历史,是客观记录在一个个科学发现的故事中,那些科学家的真实经历,如此我们才能正确全面地理解科学共同体的运作方式,知晓其合理和不足之处,进而更好地对待我们的科研人生。
参考文献
[1]Adamantidis A,Arber S,Bains JS,et al.Optogenetics:10 years after ChR2 in neurons--views from the community.Nat Neurosci,2015,18(9):1202-1212.
[2]Deisseroth K,Heist EK,Tsien RW.Translocation of calmodulin to the nucleus supports CREB phosphorylation in hippocampal neurons.Nature.1998,392(6672):198-202.
[3]Deisseroth K,Bito H,Tsien RW.Signaling from synapse to nucleus:postsynaptic CREB phosphorylation during multiple forms of hippocampal synaptic plasticity.Neuron.1996,16(1):89-101.
[4]Boyden,E.S.A history of optogenetics:the development of tools for controlling brain circuits with light.F1000 Biol.Rep.3,11(2011).
[5]Bi A,Cui J,Ma YP,Olshevskaya E,Pu M,Dizhoor AM,Pan ZH.Ectopic expression of a microbial-type rhodopsin restores visual responses in mice with photoreceptor degeneration.Neuron,2006,50(1):23-33.
[6]Boyden ES,Zhang F,Bamberg E,Nagel G,Deisseroth K.Millisecond-timescale,genetically targeted optical control of neural activity.Nat Neurosci,2005,8(9):1263-1268.
[7]Zhang F,Wang LP,Boyden ES,Deisseroth K.Channelrhodopsin-2 and optical control of excitable cells.Nat Methods.2006,3(10):785-792.
[8]Zhang F,Wang LP,Brauner M,Liewald JF,Kay K,Watzke N,Wood PG,Bamberg E,Nagel G,Gottschalk A,Deisseroth K.Multimodal fast optical interrogation of neural circuitry.Nature.2007,446(7136):633-639.
[9]Zhang F,Prigge M,Beyrière F,Tsunoda SP,Mattis J,Yizhar O,Hegemann P,Deisseroth K.Red-shifted optogenetic excitation:a tool for fast neural control derived from Volvox carteri.Nat Neurosci.2008,11(6):631-633.
[10]Zhang F,Vierock J,Yizhar O,Fenno LE,Tsunoda S,Kianianmomeni A,Prigge M,Berndt A,Cushman J,Polle J,Magnuson J,Hegemann P,Deisseroth K.The microbial opsin family of optogenetic tools.Cell.2011,147(7):1446-1457.